

 搜索


如果能按需设计一种酶,专门分解有毒污染物;或创造一种蛋白酶,精准切割与疾病相关的特定肽段,将为环境治理和生物医药带来怎样的可能?
长期以来,科学家主要依靠寻找、改造天然蛋白质来实现这些目标,要从头创造一种真正具有催化活性的酶,远比设计它的三维结构困难:多个关键原子必须在空间中精确配合,才能完成预期的化学反应。
此前,诺贝尔化学奖得主、人工蛋白质设计领域的开创者、“上帝之手”David Baker 团队已利用计算方法设计出丝氨酸水解酶、金属水解酶等多类人工酶。然而,面对涉及多个催化残基、金属离子乃至非蛋白质组分的复杂反应,如何精确控制这些原子的排列,并高效生成相应的分子结构,仍是蛋白质设计领域的一大难题。
如今,Baker 团队在《Science》再发新研究:利用生成式 AI 模型RFdiffusion3(RFD3),进一步突破复杂生物分子功能位点的设计限制,并在实验中取得两项重要成果:能水解有毒有机磷化合物的人工酶,以及能选择性切割特定肽段的蛋白酶。
不仅如此,RFD3 在多项计算测试中优于此前的方法,并将原子级设计能力拓展至 RNA 及蛋白质-核酸混合体系。
论文链接:http://www.science.org/doi/10.1126/science.aeh2982
研究人员预计,该方法未来有望应用于更广泛的生物分子设计任务。
一、RFD3 如何拓展 AI 设计能力?
2023 年,Baker 团队开发的 RFdiffusion 登上 Nature,实现了多种新型蛋白质结构的从头生成。RFdiffusion2 进一步将设计能力延伸至酶活性位点,使研究人员能够根据少量关键催化原子的空间位置构建蛋白质骨架。
然而,蛋白质整体结构合理,并不意味着它一定能够发挥预期功能。复杂的酶催化反应往往涉及多个氨基酸侧链、金属离子和小分子底物之间的精确配合。即使是能够利用关键原子作为设计条件的 RFD2,其扩散过程仍主要在残基层面进行,难以同时构建更多侧链与配体、催化残基之间的精细相互作用。
针对这一局限,研究团队开发了采用统一全原子生成架构的 RFD3。
与此前主要以氨基酸残基为单位的设计方法不同,RFD3 将蛋白质主链、侧链及核酸中的原子纳入统一建模框架。研究人员可以直接指定关键原子的空间位置、氢键关系、底物朝向及原子埋藏程度,再由模型生成满足这些条件的分子骨架,而无须事先确定催化残基在蛋白质序列中的具体位置。
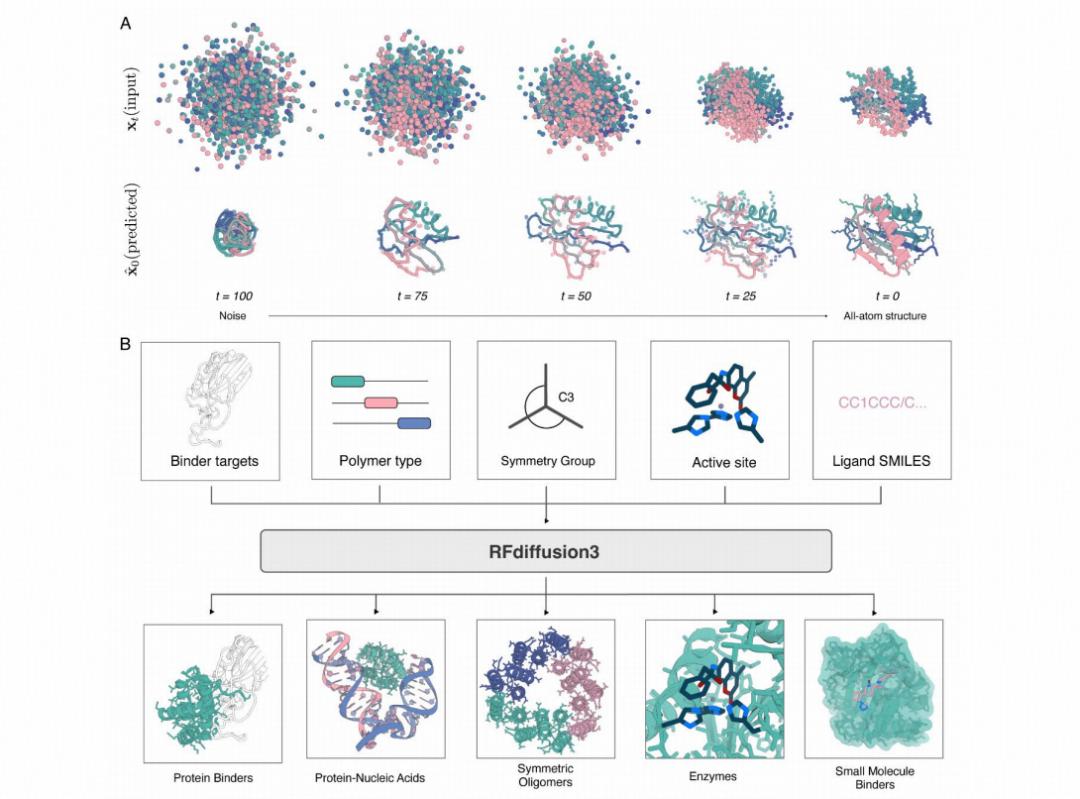
图|RFdiffusion3 的全原子扩散生成过程及不同条件下的生物分子设计示例
换言之,研究人员可以先确定实现特定功能需要怎样的原子排列,再让 AI 寻找合适的分子结构。
计算测试显示,RFD3 在设计精度和效率上均有所提升:在 41 项酶活性位点设计任务中,有 37 项优于前代 RFD2;对于典型长度的蛋白质,其生成速度较 RFD1 和 BoltzGen 快两倍以上。
RFD3 的设计对象也不再局限于蛋白质。在 57 项 RNA 结构设计测试中,21 项达到 LDDT 大于 0.9 的结构一致性标准,而对比模型 RFDpoly 为 10 项。研究团队还展示了 RNA 适配体及 RNA-蛋白质混合催化结构的计算设计能力。
RFD3 早在 2025 年就以预印本的形式公开发表。此次 Science 研究并非首次提出全原子设计方法,而是进一步展示了其在复杂催化位点和不同生物分子体系中的适用性,并通过真实实验验证了更具挑战性的人工酶设计成果。
二、从污染物降解到疾病研究
此次研究最重要的实验成果,是从头设计出两类具有催化活性的人工酶。
首先,是能够水解有机磷化合物的磷酸三酯酶。
有机磷化合物广泛用于农药、阻燃剂等产品,部分具有较强毒性且难以降解。能够水解这些化合物的酶,在环境修复和医疗对抗措施中具有潜在价值。然而,天然磷酸三酯酶的活性位点涉及 6 个催化残基、两个金属离子及特殊的赖氨酸修饰,复杂的空间约束使其难以从头设计。
研究团队以对氧磷为模型底物,利用量子化学建立催化反应的过渡态模型,再通过 RFD3 生成蛋白质骨架,并结合 LigandMPNN、AlphaFold3 等工具进行序列设计与结构筛选。
首轮 96 个候选设计中,4 个表现出催化活性。其中最活跃的 ZAPP-1 能够进行多轮催化,其催化速率常数 kcat 为 0.015 ± 0.003 s⁻¹。研究人员进一步通过调节赖氨酸氨甲酰化条件、突变关键催化残基等实验,验证了设计活性位点与实际催化反应之间的联系。
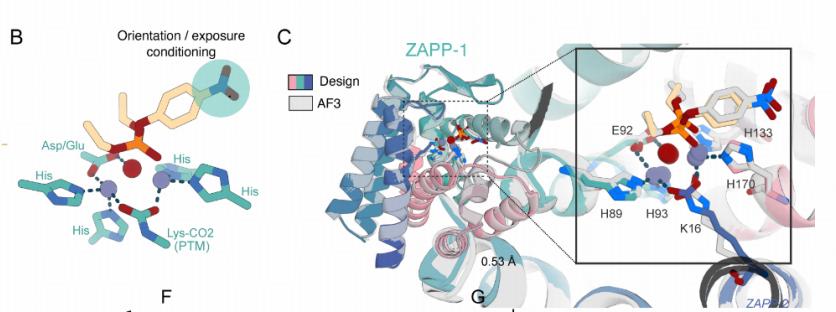
图|RFD3 设计的磷酸三酯酶活性位点及 ZAPP-1 分子结构
第二轮实验中,团队又从 192 个设计中获得多个活性酶,其中经过表征的优秀设计覆盖 4 种不同的蛋白质骨架。ZAPP-2 的催化反应速率相较无催化条件提高约50 万倍。
这表明,RFD3 不仅能够为复杂化学反应设计具有活性的酶,还能够找到不同的结构方案,为开发针对特定化学物质的生物催化剂提供新的可能。
另一项实验聚焦与淀粉样变性疾病相关的转甲状腺素蛋白(TTR)。
TTR 的异常折叠和聚集可能损害心脏、神经系统及肾脏等器官。研究人员利用 RFD3 设计了能够识别并切割特定 TTR 来源肽序列的人工蛋白酶。
在 96 个候选设计中,56 个在顺式实验中的切割率超过 10%。其中,TTRg11 能够在 1 小时内切割大部分目标报告底物,质谱分析证实切割发生在预定位置。
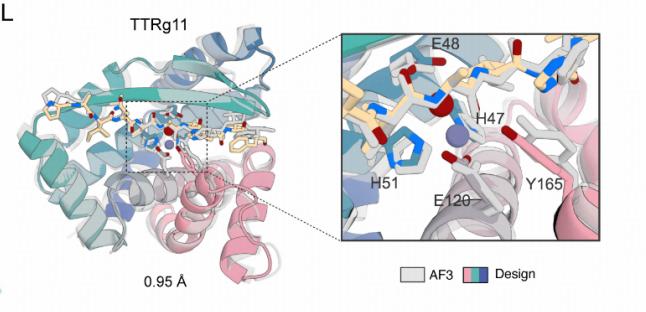
图|人工蛋白酶 TTRg11 的分子结构及活性位点
与另外 6 种疾病相关蛋白质来源肽相比,TTRg11 对目标底物具有明显更高的活性,未经实验优化,其催化效率 kcat/KM 达到 1100 ± 300 M⁻¹ s⁻¹,处于部分天然蛋白酶催化效率范围的低端(天然酶多在 10⁴–10⁸)。
这一结果展示了按指定底物设计人工蛋白酶的潜力,但尚不能证明其能够在人体内清除 TTR 淀粉样沉积,更不意味着已经获得治疗药物。
从应用前景看,精确设计人工酶有望拓展工业生物催化能够处理的反应范围,为特定污染物降解提供新工具;具有目标识别和切割能力的人工蛋白质,则可能用于疾病机制研究、分子检测及潜在治疗策略开发。RFD3 对 RNA 和蛋白质—核酸混合体系的支持,也为 RNA 适配体、核酶等功能分子的设计提供了新的路径。
不过,从实验室获得活性酶到实际应用,仍需进一步提高催化效率、稳定性和安全性。部分 RNA 设计成果目前也主要依赖计算预测,尚待更多实验验证。
从 AlphaFold 对蛋白质结构的预测,到 RFdiffusion 对新型蛋白质的生成,再到 RFD3 对复杂催化位点的精确设计,AI 正在逐步拓展生物分子设计的能力。
更多技术细节,详见原论文。
